La electricidad de los alimentos
Las vías metabólicas de los macronutrientes y cómo las mitocondrias reducen la comida a una fuente de electrones
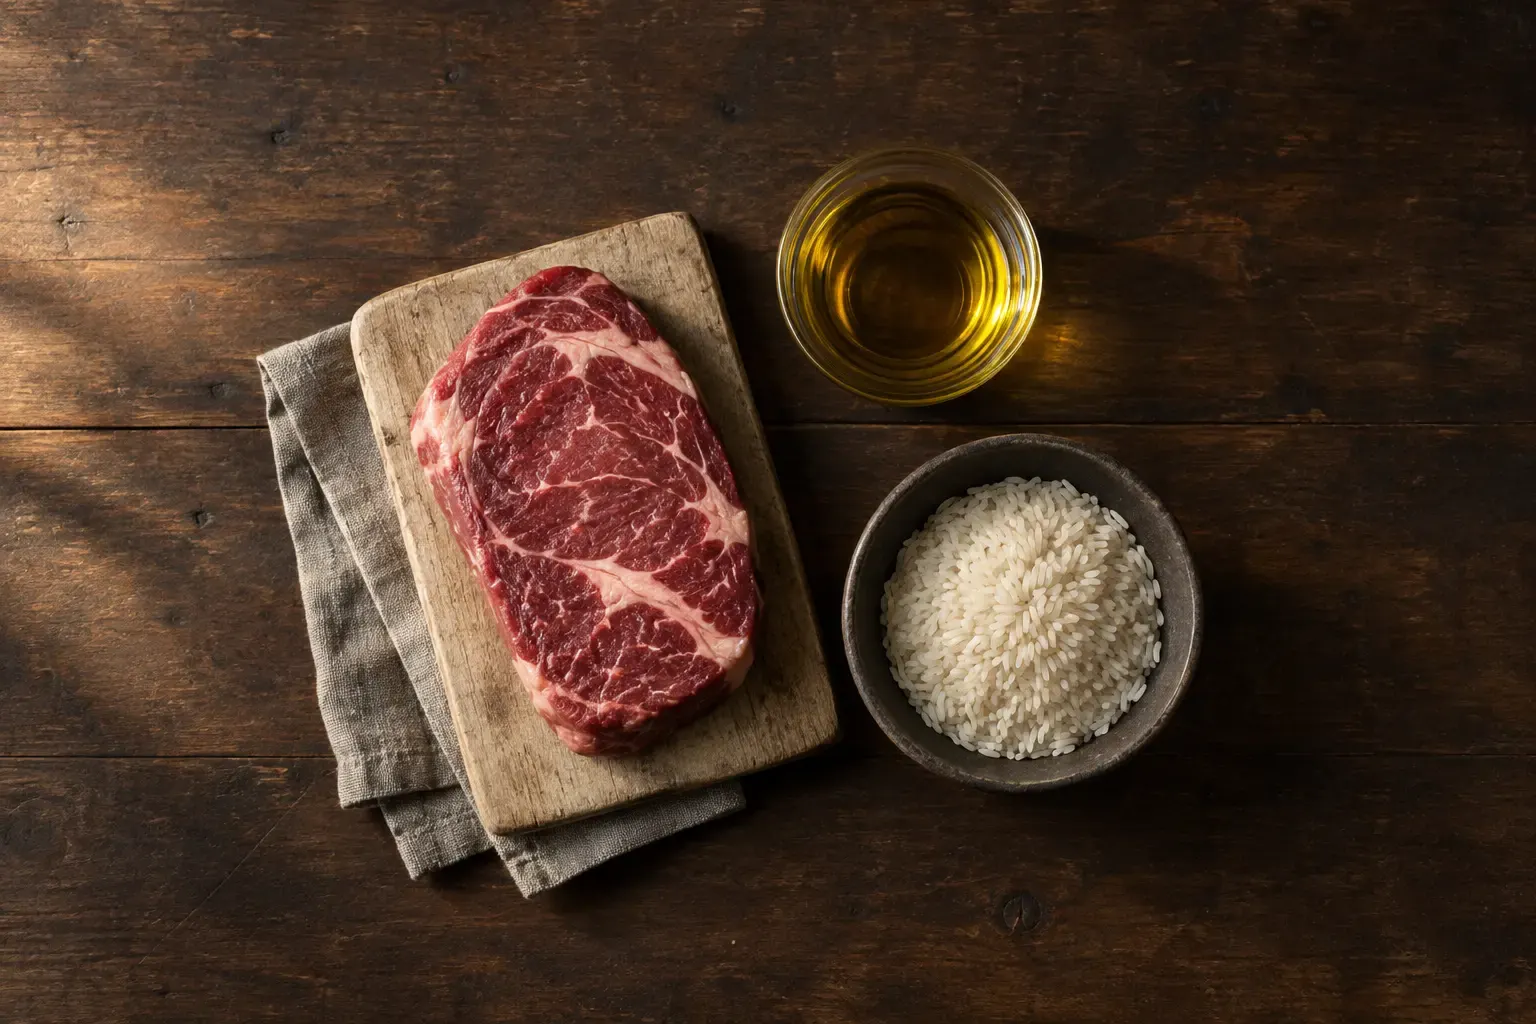
Detrás de cada plato de comida se esconde una realidad biológica que no todo el mundo conoce. Un corte de carne, un chorro de aceite de oliva o un plato de arroz son, ante todo, colecciones de moléculas orgánicas unidas por enlaces químicos. La función principal del metabolismo no es utilizar esas moléculas tal como entran por la boca, sino desmontarlas paso a paso para extraer algo mucho más elemental: sus electrones.
Dentro de casi todas tus células existen cientos de centrales energéticas llamadas mitocondrias. Su misión es recoger esos electrones de alta energía a través de unas moléculas orgánicas que actúan como «taxis» (NADH y FADH₂). Estos taxis llevan los electrones hasta una autopista microscópica situada en la membrana interna de la mitocondria: la cadena de transporte de electrones.
A medida que los electrones saltan de una estación a otra dentro de la mitocondria, van liberando energía. La célula aprovecha ese movimiento para bombear protones al exterior de la matriz mitocondrial, creando una especie de «presa hidráulica» microscópica. Cuando esos protones regresan al interior a través de una turbina molecular llamada ATP sintasa, se genera la moneda de cambio energética del cuerpo: el ATP (trifosfato de adenosina).
Para que este circuito eléctrico no se colapse, hace falta un aceptor final que recoja los electrones al terminar el recorrido. Ese papel lo desempeña el oxígeno que respiras, que al unirse a los electrones y protones sobrantes forma algo tan simple como agua (H₂O). Sin oxígeno la corriente se interrumpe, la producción de ATP se frena en seco y la célula se queda sin energía.
Las tres vías metabólicas
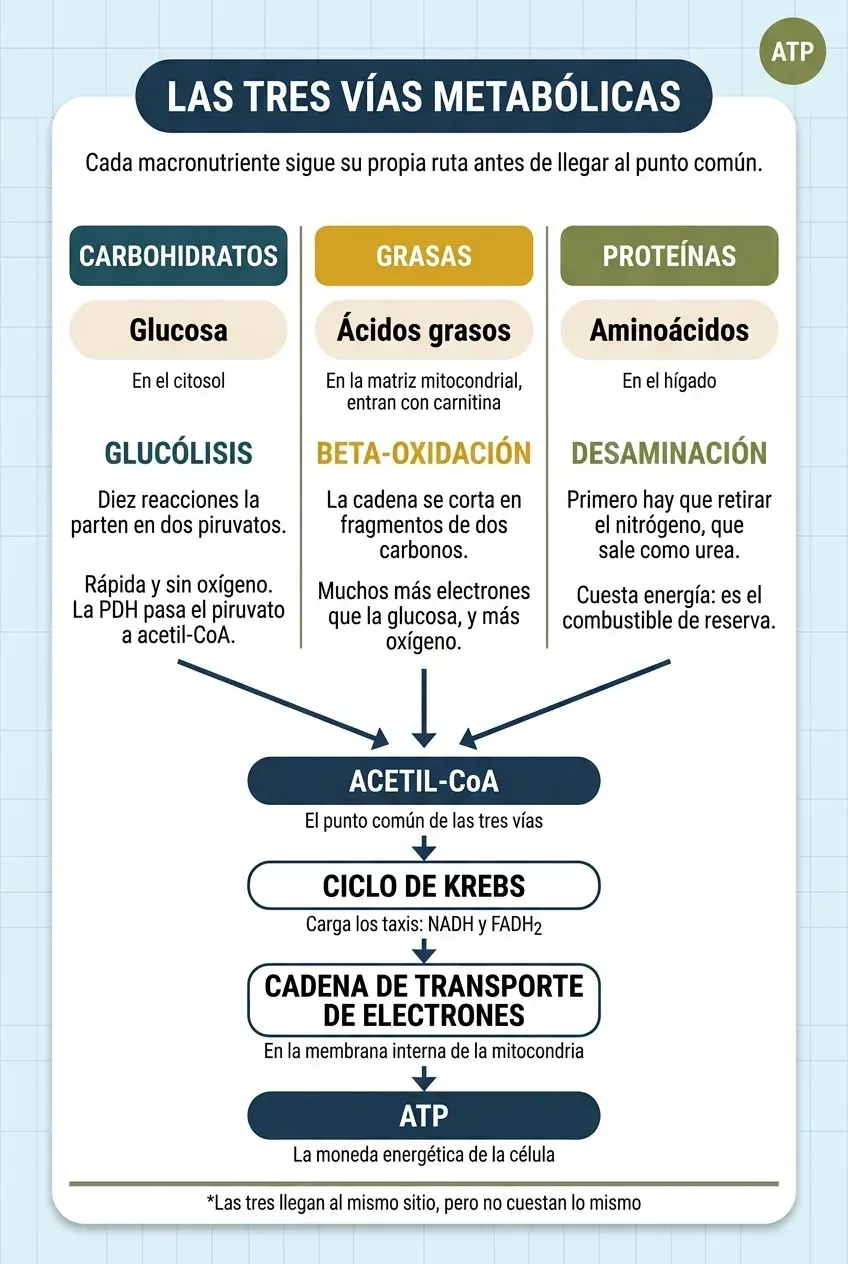
Aunque el objetivo final siempre es extraer electrones para fabricar ATP, la forma en que el cuerpo procesa cada macronutriente sigue rutas bioquímicas radicalmente distintas antes de llegar a un punto común: la molécula de acetil-CoA.
Carbohidratos: la vía de la glucólisis
Los hidratos de carbono se descomponen en glucosa. Dentro del fluido celular (el citosol), la glucosa se somete a la glucólisis, una serie de diez reacciones químicas que la dividen en dos moléculas de piruvato.
- Rapidez sin oxígeno. Su gran ventaja es que puede generar ATP de forma muy rápida y sin necesidad de oxígeno. Es el recurso inmediato ante esfuerzos intensos.
- El paso a la mitocondria. Para extraer el resto de su energía, el piruvato entra en la mitocondria, donde la enzima piruvato deshidrogenasa (PDH) lo convierte en acetil-CoA para alimentar el ciclo de Krebs y la cadena de electrones.
Grasas: la vía de la beta-oxidación
Las grasas se dividen en ácidos grasos. Para ser utilizadas, deben viajar al interior de la mitocondria ayudadas por un transporte especial llamado carnitina.
Una vez dentro sufren la beta-oxidación: un proceso en el que la cadena de grasa se va cortando repetidamente en fragmentos de dos carbonos, generando una enorme cantidad de acetil-CoA y de taxis cargados de electrones (NADH y FADH₂). Como las grasas están repletas de enlaces carbono-hidrógeno, contienen una cantidad de electrones muy superior a la de los carbohidratos. Requieren más oxígeno para «quemarse», pero ofrecen una reserva energética casi inagotable.
Proteínas: la vía de la desaminación
Las proteínas están formadas por aminoácidos. A diferencia de las grasas y los carbohidratos, los aminoácidos contienen nitrógeno en un grupo amino (-NH₂). Puesto que el nitrógeno no sirve para generar energía y resulta tóxico en exceso, el hígado debe retirarlo primero mediante la desaminación.
El nitrógeno eliminado se convierte en urea para ser expulsado por la orina. Solo entonces el esqueleto de carbono restante puede convertirse en intermediarios para fabricar ATP. Por esta razón, utilizar proteína como combustible implica un gasto metabólico extra, y el cuerpo solo recurre a ello de forma secundaria o en situaciones de extrema necesidad.
Flexibilidad y rigidez metabólica
El organismo no elige qué combustible usar al azar. La selección depende del estado hormonal y de las demandas de energía.
- Estado posprandial (tras comer). La elevación de la glucemia estimula a las células beta del páncreas para secretar insulina. La insulina activa fosfatasas que estimulan la glucógeno sintasa y la enzima fosfofructocinasa-1 (PFK-1), promoviendo el almacenamiento y la oxidación de la glucosa. Simultáneamente, inhibe a la lipasa sensible a hormonas (HSL) en el tejido adiposo, bloqueando la liberación de ácidos grasos a la circulación. En otras palabras, se frena la salida de la grasa almacenada: mientras la insulina esté alta, el cuerpo prioriza el uso y el almacenamiento de glucosa.
- Estado de ayuno o ejercicio. La disminución de la glucosa en sangre o el incremento del estrés fisiológico estimulan la secreción de glucagón y catecolaminas (adrenalina y noradrenalina). Estas hormonas activan la HSL mediante la vía del AMP cíclico (cAMP), movilizando ácidos grasos para su oxidación.
- Intensidad del ejercicio. Durante la actividad física, la contracción muscular activa la enzima AMPK (proteína cinasa activada por AMP) debido al consumo de ATP. A intensidades bajas o moderadas, como caminar, la presencia de oxígeno permite que la beta-oxidación satisfaga la mayor parte de la demanda. A medida que la intensidad aumenta, el reclutamiento de fibras musculares de sacudida rápida y la limitación en la velocidad de transporte mitocondrial de los ácidos grasos desplazan la selección de sustrato hacia la glucólisis, independientemente de la concentración de insulina.
¿Qué es la rigidez metabólica?
Si la flexibilidad metabólica es la capacidad de un organismo sano para alternar sin problemas entre quemar grasas y quemar glucosa, la rigidez aparece cuando esa capacidad de adaptación se rompe en cualquiera de los dos sentidos:
- Incapacidad para quemar grasa. Mantener picos constantes de insulina por exceso calórico y sedentarismo mantiene bloqueado el acceso a la grasa. La célula se vuelve «rígida» y depende continuamente del aporte externo de azúcar para funcionar.
- Incapacidad temporal para procesar glucosa. Al contrario, si una persona elimina por completo los carbohidratos durante mucho tiempo, la enzima piruvato deshidrogenasa (PDH) reduce su actividad. Si esa persona consume de repente una gran cantidad de carbohidratos, su cuerpo tardará un tiempo en reactivar la maquinaria glucolítica y mostrará picos de glucosa elevados de forma transitoria.
Estrategia práctica: movimiento y calidad de las grasas
Para mantener este engranaje metabólico funcionando correctamente, dos factores resultan determinantes en la vida diaria: el estímulo muscular y la calidad del combustible.
El problema del sedentarismo
El sedentarismo reduce la densidad mitocondrial y la sensibilidad a la insulina. El ejercicio, en cambio, actúa como un interruptor directo. Al contraerse los músculos, la enzima AMPK detecta el gasto de energía y promueve que los transportadores GLUT4 viajen a la superficie celular para capturar glucosa de la sangre sin necesidad de usar insulina.
El estímulo necesario para mantener esta maquinaria no exige entrenamiento de alto rendimiento: sesiones de fuerza o de resistencia moderada repartidas a lo largo de la semana, o simple actividad diaria acumulada, bastan para promover la biogénesis mitocondrial. No hace falta ser un atleta profesional para conservar una correcta flexibilidad metabólica, pero el ejercicio físico es fundamental para un organismo sano.
La estabilidad química de las grasas
Las grasas son una importante fuente de energía, pero no todos los lípidos se comportan de la misma forma en el organismo. La clave está en su estructura molecular:
- Grasas saturadas y monoinsaturadas. Las saturadas (presentes en carnes de animales criados en pasto, en la manteca o en el aceite de coco) y las monoinsaturadas (como el ácido oleico del aceite de oliva) no tienen dobles enlaces, o solo tienen uno. Esa estructura las hace altamente estables y resistentes a la oxidación. Además, las grasas animales de calidad aportan vitaminas liposolubles (A, D₃ y K₂) y coenzima Q₁₀, clave para el rendimiento mitocondrial.
- Grasas poliinsaturadas (PUFA) y antinutrientes. Los aceites vegetales refinados y algunos frutos secos en exceso contienen altas cantidades de grasas poliinsaturadas (omega-6), cuyos múltiples dobles enlaces las vuelven vulnerables a alterarse por calor u oxidación. Asimismo, los frutos secos crudos contienen ácido fítico y lectinas, compuestos que pueden reducir la absorción de minerales esenciales como el zinc o el magnesio.
El factor ambiental en la función mitocondrial: el rendimiento de la mitocondria también se ve modulado por estímulos ambientales como la luz solar. La radiación en el espectro del infrarrojo cercano penetra los tejidos y estimula la enzima citocromo c oxidasa —una de las estaciones de la cadena de electrones—, optimizando la producción de ATP. No es lo mismo comer en interiores que al aire libre, de la misma manera que el organismo no puede ser eficiente si está sistemáticamente privado de luz solar.
Cómo la política alimentaria alteró nuestra biología
Si nuestro organismo es una máquina tan precisa, ¿por qué la rigidez metabólica y la diabetes tipo 2 se han convertido en una epidemia moderna? La respuesta combina sesgos científicos con presiones comerciales.
En la década de 1950, el investigador Ancel Keys impulsó la hipótesis de que las grasas saturadas eran las únicas responsables de las enfermedades del corazón. Aunque su estudio ignoró los datos de los países que no encajaban con su teoría, la idea caló hondo en las instituciones.
Años más tarde, unos documentos históricos revelaron que en 1965 la Sugar Research Foundation —el lobby de la industria del azúcar en Estados Unidos— pagó en secreto a científicos de la Universidad de Harvard para publicar revisiones que minimizaran el impacto del azúcar en la salud cardiovascular y señalaran a las grasas como el único enemigo. El resultado definitivo de este proceso llegó en 1992, cuando el Departamento de Agricultura de Estados Unidos (USDA) lanzó la mundialmente conocida pirámide nutricional.
Fuertemente influida por la industria de los cereales, la guía situó en su base la recomendación de consumir numerosas raciones diarias de pan, pasta, arroz y harinas. Las marcas comerciales respondieron inundando las estanterías con productos low-fat (bajos en grasa) y, para compensar la pérdida de sabor al quitar la grasa, añadieron grandes cantidades de azúcares refinados y jarabes de fructosa. Tres décadas después de aquel experimento nutricional, los índices de obesidad y de problemas metabólicos alcanzaron máximos históricos en todo el mundo.
Ningún macronutriente es dañino per se
El cuerpo humano no entiende de modas ni de dogmas alimentarios: responde a principios de bioquímica, de química orgánica y de termodinámica, y está perfectamente preparado para metabolizar los tres macronutrientes.
Comprender que la comida es una fuente de electrones destinada a producir ATP nos permite ver la nutrición con mayor claridad. No se trata de demonizar macronutrientes, sino de ofrecer a las mitocondrias alimentos de alta estabilidad química, mantener la masa muscular activa mediante el movimiento y devolverle al organismo la capacidad adaptativa con la que fue diseñado.
Referencias y respaldo científico
- El manual de referencia de la bioenergética. Nicholls, D. G., & Ferguson, S. J. (2013). Bioenergetics 4. Academic Press. Consultar el libro en ScienceDirect
- La teoría quimiosmótica que explicó cómo se fabrica el ATP. Mitchell, P. (1961). Coupling of phosphorylation to electron and hydrogen transfer by a chemi-osmotic type of mechanism. Nature, 191(4784), 144-148. Consultar estudio (DOI)
- La selección de combustible cuando el interruptor falla. Kelley, D. E., & Mandarino, L. J. (2000). Fuel selection in human skeletal muscle in insulin resistance: a reexamination. Diabetes, 49(5), 677-683. Consultar estudio (DOI)
- Qué es exactamente la flexibilidad metabólica. Goodpaster, B. H., & Sparks, L. M. (2017). Metabolic flexibility in health and disease. Cell Metabolism, 25(5), 1027-1036. Consultar estudio en PubMed Central
- El ciclo de Randle: glucosa y grasa compitiendo por el mismo horno. Randle, P. J., Garland, P. B., Hales, C. N., & Newsholme, E. A. (1963). The glucose fatty-acid cycle. Its role in insulin sensitivity and the metabolic disturbances of diabetes mellitus. The Lancet, 281(7285), 785-789. Consultar estudio (DOI)
- La contracción muscular capta glucosa sin insulina. Richter, E. A., & Hargreaves, M. (2013). Exercise, GLUT4, and skeletal muscle glucose uptake. Physiological Reviews, 93(3), 993-1017. Consultar estudio (DOI)
- La AMPK como sensor de energía celular. Hardie, D. G., Ross, F. A., & Hawley, S. A. (2012). AMPK: a nutrient and energy sensor that maintains energy homeostasis. Nature Reviews Molecular Cell Biology, 13(4), 251-262. Consultar estudio en PubMed Central
- La luz roja e infrarroja estimula la citocromo c oxidasa. Karu, T. I. (2008). Mitochondrial signaling in mammalian cells activated by red and near-IR radiation. Photochemistry and Photobiology, 84(5), 1091-1099. Consultar estudio (DOI)
- Qué le ocurre a un aceite poliinsaturado cuando se calienta. Grootveld, M., Silwood, C. J. L., Addis, P., Claxson, A., Serra, B. B., & Viana, M. (2001). Health effects of oxidized heated oils. Foodservice Research International, 13(1), 41-55. Consultar estudio (DOI)
- El ácido fítico y la absorción de minerales. Schlemmer, U., Frølich, W., Prieto, R. M., & Grases, F. (2009). Phytate in foods and significance for humans: food sources, intake, processing, bioavailability, protective role and analysis. Molecular Nutrition & Food Research, 53(S2), S330-S375. Consultar estudio (DOI)
- Los documentos internos de la industria del azúcar. Kearns, C. E., Schmidt, L. A., & Glantz, S. A. (2016). Sugar industry and coronary heart disease research: a historical analysis of internal industry documents. JAMA Internal Medicine, 176(11), 1680-1685. Consultar estudio en PubMed Central
- El estudio que sentó a la grasa saturada en el banquillo. Keys, A. (1980). Seven Countries: A Multivariate Analysis of Death and Coronary Heart Disease. Harvard University Press. Consultar las publicaciones del estudio
- Cómo la industria influye en las guías alimentarias. Nestle, M. (2013). Food Politics: How the Food Industry Influences Nutrition and Health. University of California Press. Consultar el libro en la editorial
Estamos preparando el espacio para que puedas comentar los artículos.
Sigue leyendo
La arquitectura molecular
Longitud de cadena, grado de saturación y el destino metabólico de los ácidos grasos
Glicina: el ladrillo olvidado de la vida
El aminoácido clave que frena el envejecimiento celular, mejora el sueño y reconstruye tus tejidos desde el interior
La vitamina B5
El conector universal de la vida y el motor invisible de la célula